انواع تاژک باکتری ؛ آشنایی با تفاوت مونوترش، آمفیترش و لوپوترش
در دنیای میکروسکوپی، توانایی حرکت هدفمند یکی از عوامل اصلی موفقیت تکاملی باکتریهاست. باکتریها برای حرکت به سمت مواد مغذی و شرایط مطلوب از پدیدهای به نام کموتاکسی مثبت (Positive Chemotaxis) استفاده میکنند. همچنین برای دور شدن از مواد شیمیایی سمی و شرایط نامساعد، به کموتاکسی منفی (Negative Chemotaxis) متکی هستند. باکتریهای متحرک برای جابهجایی از ساختارهای مولکولی ویژهای به نام تاژک (Flagella) استفاده میکنند. تاژکها زائدههایی پروتئینی و تخصصیافته هستند که حرکت سلول را امکانپذیر میکنند.
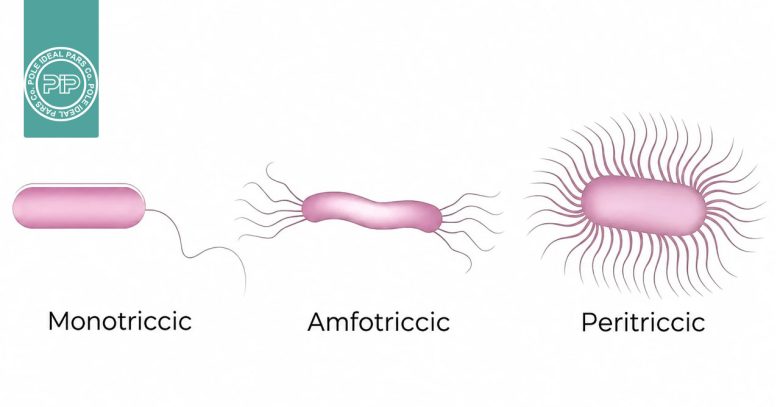
ساختار بیوشیمیایی اصلی تاژک در گروههای مختلف باکتریایی شباهت زیادی به یکدیگر دارد. بااینحال، تعداد تاژکها و نحوه قرارگیری آنها روی سطح سلول متفاوت است. این تفاوتها صرفاً تغییرات ظاهری نیستند، بلکه نتیجه سازگاریهای تکاملی محسوب میشوند. آرایش تاژکها بر کارایی حرکت، توانایی ایجاد نیروی چرخشی و سازگاری باکتری با شرایط محیطی تأثیر میگذارد. در این مقاله، انواع تاژک باکتری را بررسی میکنیم و با سه نوع اصلی آرایش قطبی تاژکهای باکتریایی، یعنی مونوترش (Monotrichous)، آمفیترش (Amphitrichous) و لوپوترش (Lophotrichous)، از نظر ساختار، عملکرد مکانیکی و نقش زیستمحیطی آشنا میشویم. پس با ما همراه باشید.
ساختار تاژک باکتریایی و نحوه تأمین انرژی برای حرکت
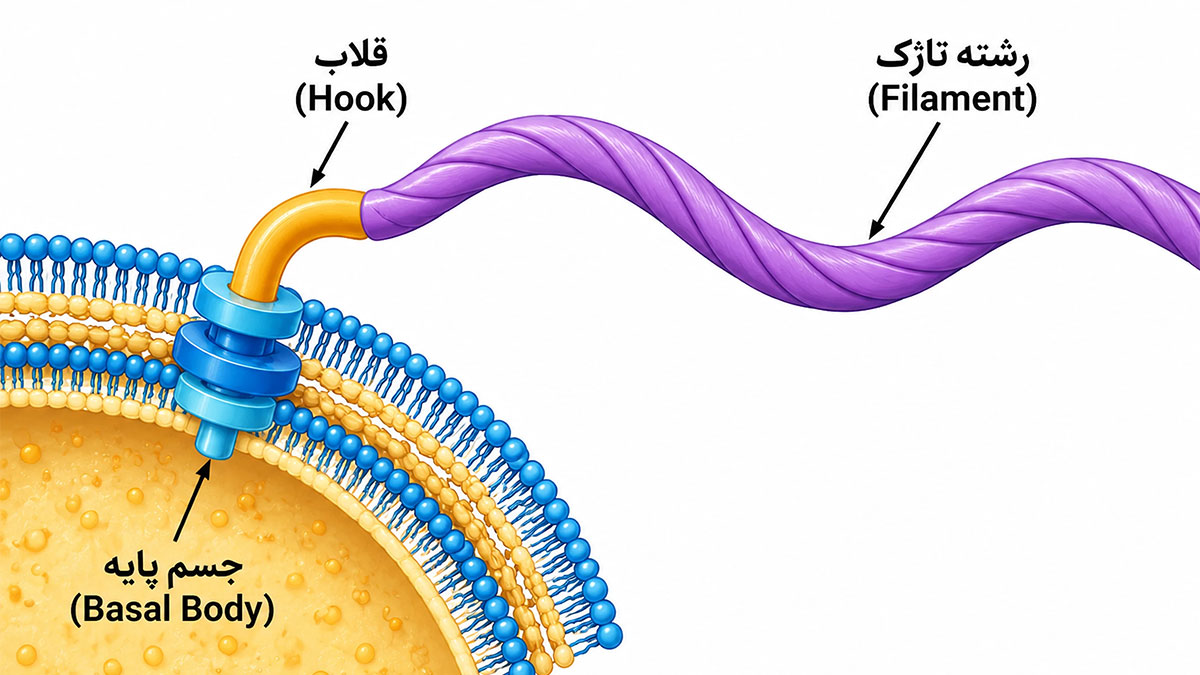
برای درک تأثیر نحوه قرارگیری تاژکها بر حرکت سلول، ابتدا باید سازوکار فیزیکی و زیستی عملکرد آنها را بررسی کنیم. این سازوکار در انواع مختلف تاژک باکتریایی مشترک است.
تاژکهای باکتریایی با تاژکهای سلولهای یوکاریوتی تفاوت دارند. تاژکهای یوکاریوتی با مصرف مستقیم انرژی حاصل از ATP (آدنوزین تریفسفات) و ایجاد حرکات موجی، باعث جابهجایی سلول میشوند. در مقابل، تاژکهای پروکاریوتی ساختاری نسبتاً سخت دارند و مانند یک ملخ چرخان عمل میکنند. انرژی لازم برای چرخش آنها از شیب الکتروشیمیایی در دو سوی غشای سلولی تأمین میشود. شناخت این سازوکار، به درک بهتر ارتباط میان ساختار و نحوه قرارگیری انواع تاژک باکتری و الگوی حرکتی آنها کمک میکند.
دستگاه تاژکی از سه بخش اصلی تشکیل شده است:
جسم پایه (Basal Body)
جسم پایه مانند یک موتور چرخشی دوطرفه عمل میکند. این ساختار در غشای پلاسمایی و لایه پپتیدوگلیکان دیواره سلولی قرار دارد. جسم پایه از یک میله مرکزی و چندین حلقه تشکیل شده است. این حلقهها شامل حلقههای L، P، MS و C هستند و نقش اجزای چرخان و تکیهگاههای مکانیکی را ایفا میکنند.
نیروی لازم برای چرخش تاژک از ورود یونهای پروتون (H+) یا یونهای سدیم (Na+) تأمین میشود. این یونها از طریق پروتئینهای کانالی ثابت به نام استاتورهای MotA و MotB عبور میکنند. در نتیجه، انرژی الکتروشیمیایی به نیروی مکانیکی و گشتاور چرخشی تبدیل میشود.
قلاب (Hook)
قلاب از پروتئینی به نام FlgE ساخته شده است. این ساختار انعطافپذیر و خمیده، کمی فراتر از غشای خارجی سلول امتداد پیدا میکند. قلاب مانند یک مفصل انعطافپذیر عمل میکند. وظیفه آن انتقال انرژی چرخشی جسم پایه به رشته بلند تاژک در خارج از سلول است.
رشته تاژک (Filament)
رشته تاژک ساختاری توخالی و نسبتاً سخت دارد. این بخش از هزاران زیرواحد تکرارشونده پروتئینی به نام فلاژلین (Flagellin یا FliC) تشکیل شده است.
ساختار مارپیچی رشته تاژک به آن اجازه میدهد مانند یک ملخ عمل کند. با چرخش این ساختار، نیروی رانشی ایجاد میشود و باکتری به سمت جلو حرکت میکند.
آرایش مونوترش؛ یک تاژک منفرد در قطب سلول باکتری
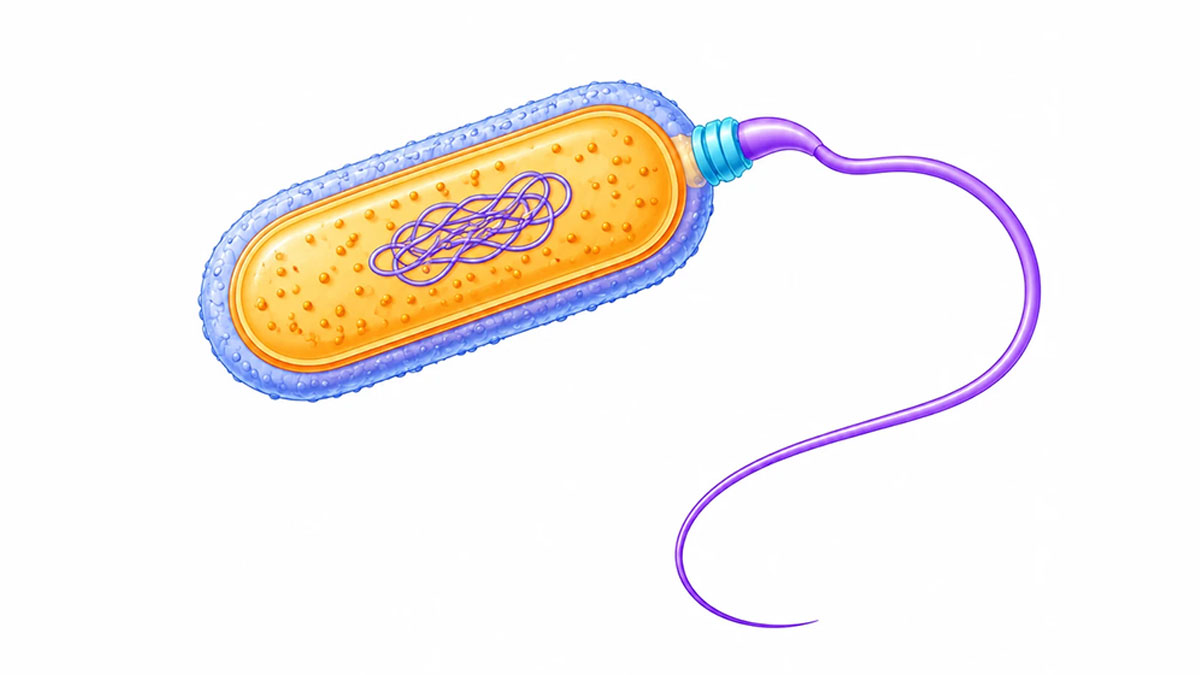
آرایش مونوترش (Monotrichous Flagellation) یکی از سادهترین انواع آرایش قطبی تاژکها در باکتریهاست. واژه مونوترش از دو واژه یونانی monos به معنای «تک» و thrix به معنای «مو» گرفته شده است. در این آرایش، یک باکتری میلهایشکل تنها یک تاژک دارد که در یکی از قطبهای سلول قرار گرفته است. این الگوی ساختاری یکی از مهمترین نمونهها در بررسی انواع تاژک باکتری و ارتباط میان آرایش تاژک و نحوه حرکت سلول محسوب میشود.
سینماتیک حرکت و سازوکار تغییر جهت
باکتریهای مونوترش از الگوی حرکتی پویایی به نام «حرکت رو به جلو، حرکت معکوس و چرخش ناگهانی» (Run-Reverse-Flick) یا «حرکت و بازگشت» (Run-and-Reverse) استفاده میکنند.
ازآنجاکه این باکتریها تنها به یک منبع نیروی محرکه متکی هستند، جهت حرکت آنها مستقیماً به جهت چرخش موتور پایه بستگی دارد.
– چرخش پادساعتگرد (Counterclockwise یا CCW): هنگامی که موتور در جهت پادساعتگرد میچرخد، رشته مارپیچی تاژک نیرویی به بدن سلول وارد میکند و آن را به سمت جلو میراند. در نتیجه، باکتری با سرعت زیاد در مسیری مستقیم حرکت میکند. به این نوع حرکت «حرکت رو به جلو» (Run) گفته میشود.
– چرخش ساعتگرد (Clockwise یا CW): با تغییر جهت چرخش موتور به حالت ساعتگرد، باکتری به سمت عقب کشیده میشود. در بسیاری از گونههای مونوترش، تغییر ناگهانی نیروی کششی به نیروی فشاری باعث ایجاد ناپایداری مکانیکی در قلاب انعطافپذیر تاژک میشود. در نتیجه، قلاب دچار کمانش میشود و یک حرکت ناگهانی و نامتقارن به نام «فلیک» (Flick) ایجاد میکند. این حرکت باعث میشود بدن سلول پیش از آغاز حرکت رو به جلوی بعدی در جهت پادساعتگرد، با زاویهای تصادفی تغییر جهت دهد.
مزایا و محدودیتهای هیدرودینامیکی
از دیدگاه دینامیک سیالات، ساختار مونوترش باعث کاهش مقاومت در برابر حرکت میشود. نبود رشتههای تاژکی اضافی، تداخل هیدرودینامیکی را به حداقل میرساند. در نتیجه، باکتری میتواند در محیطهای آبی با ویسکوزیته پایین به سرعتهای قابلتوجهی دست پیدا کند.
بااینحال، این ساختار ساده قدرت مانور باکتری را محدود میکند. ازآنجاکه سازوکار کمانش قلاب ماهیتی تصادفی دارد، تغییر جهت حرکت نیز بهصورت تصادفی انجام میشود و کنترل دقیقی بر آن وجود ندارد. بنابراین، باکتری برای قرارگیری دقیق در مسیر منبع مواد مغذی باید چندین چرخه حرکت رو به جلو و چرخش ناگهانی را اجرا کند.
در مجموع، آرایش مونوترش نمونهای روشن از تأثیر ساختار و تعداد تاژکها بر الگوی حرکتی باکتریهاست. بررسی این آرایش در کنار سایر انواع تاژک باکتری به درک بهتر تفاوتهای حرکتی و سازگاری باکتریها با محیطهای مختلف کمک میکند.
آرایش آمفیترش؛ قرارگیری تاژک در دو قطب سلول باکتری
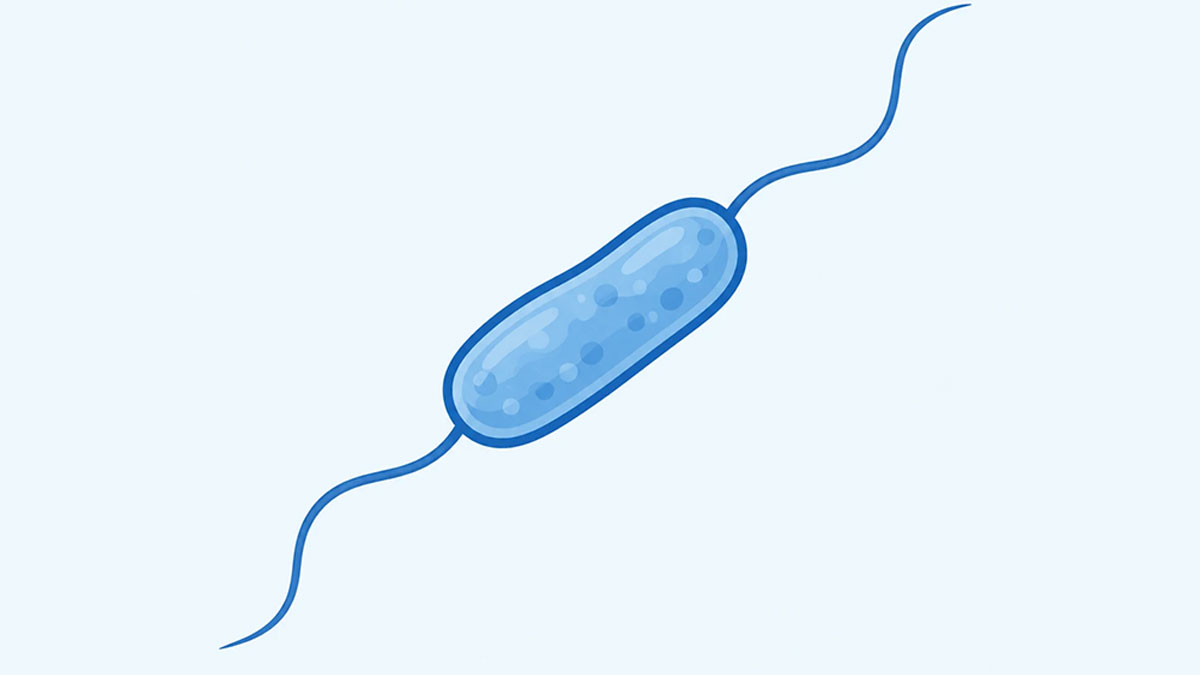
در آرایش آمفیترش (Amphitrichous Flagellation) ، واژه amphi- به معنای «هر دو» یا «دوگانه» است. در این حالت، ساختارهای تاژکی در هر دو قطب مخالف سلول باکتری قرار میگیرند. این آرایش میتواند به دو شکل دیده شود: وجود یک تاژک در هر انتهای سلول یا وجود دستههای مجزای تاژکی در دو قطب. این نوع آرایش یکی از الگوهای مهم در طبقهبندی انواع تاژک باکتری است که امکان حرکت در دو جهت مخالف را برای سلول فراهم میکند.
هماهنگی مکانیکی
ویژگی اصلی حرکت آمفیترش، جابهجایی عملکردی و متناوب بین دو قطب سلول است. برای جلوگیری از ایجاد نیروهای حرکتی مخالف و ناکارآمد، موتورهای دو انتهای سلول بهصورت هماهنگ عمل میکنند و بسته به الگوی حرکتی، نقش رانش یا کشش را بر عهده میگیرند.
– حرکت در یک جهت: موتور تاژکی در قطب خلفی سلول بهگونهای میچرخد که رشته تاژک نیروی رانشی ایجاد کند. همزمان، موتور قطب قدامی ممکن است چرخش خود را متوقف کند تا رشته تاژک در امتداد بدن سلول بهصورت غیرفعال قرار بگیرد و مقاومت حرکتی به حداقل برسد؛ یا در جهتی بچرخد که به کشیده شدن سلول به سمت جلو کمک کند.
– تغییر جهت در امتداد محور سلول: برای تغییر مسیر حرکت، باکتری میتواند نقش عملکردی دو قطب خود را جابهجا کند. در این حالت، تاژک قطبی که پیشتر در قسمت قدامی قرار داشت، نیروی محرکه فعال را تأمین میکند. در مقابل، تاژک قطب خلفی به حالت غیرفعال یا کشنده تغییر وضعیت میدهد. این سازوکار به باکتری اجازه میدهد بدون نیاز به چرخش فیزیکی بدن سلول، جهت حرکت خود را در امتداد محور طولی تا ۱۸۰ درجه معکوس کند.
سازگاری با زیستگاه
باکتریهای دارای آرایش آمفیترش از نظر حرکتی قابلیت مناسبی برای زندگی در محیطهای میکروسیالی با فضای حرکتی محدود دارند. در فضاهای باریک، مانند کانالهای مویین عمیق خاک، رسوبات آبی یا فضاهای محدود میان سلولهای بافت میزبان، امکان چرخش کامل بدن باکتری وجود ندارد یا بسیار محدود است.
توانایی تغییر مستقیم جهت حرکت در امتداد محور سلول، بدون نیاز به چرخش بدن باکتری، یک مزیت مهم برای این نوع آرایش تاژکی محسوب میشود. این ویژگی به باکتری کمک میکند تا در محیطهای پیچیده و فضاهای محدود، انعطافپذیری حرکتی بیشتری داشته باشد.
در مجموع، آرایش آمفیترش نشان میدهد که نحوه توزیع تاژکها در دو قطب سلول چگونه میتواند بر جهت و انعطافپذیری حرکت تأثیر بگذارد. به همین دلیل، شناخت این الگو در بررسی انواع تاژک باکتری و مقایسه توانایی حرکتی گونههای مختلف اهمیت دارد.
آرایش لوپوترش؛ تجمع دستهای تاژکها در قطب باکتری
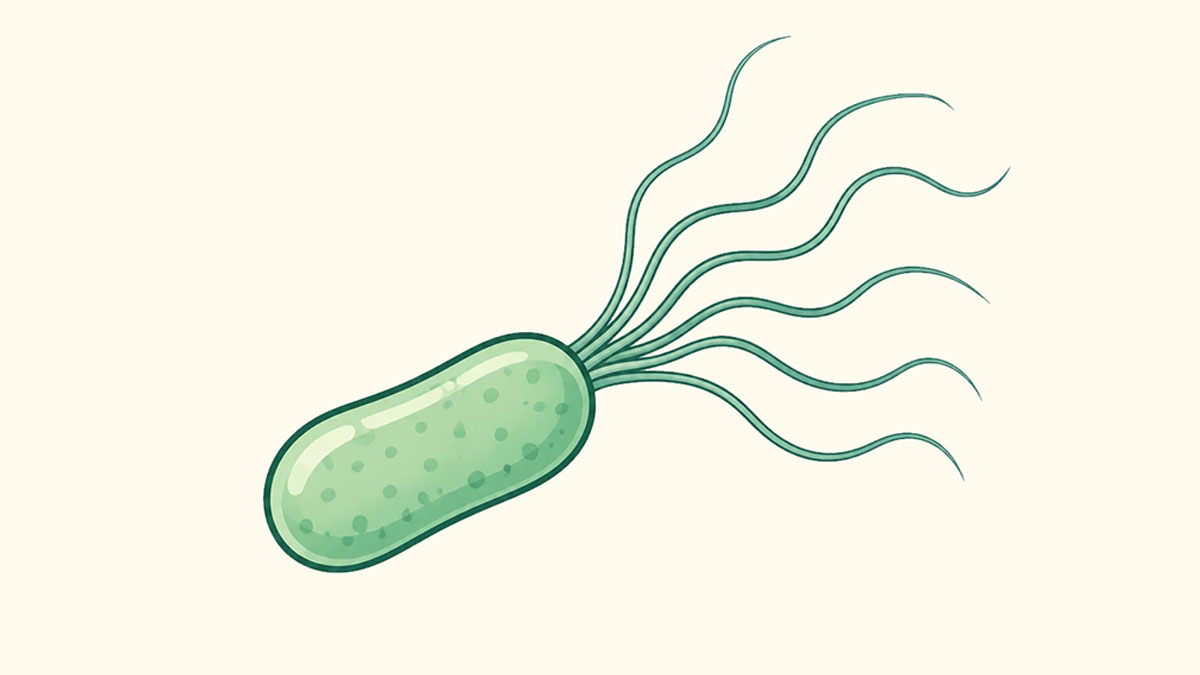
آرایش لوپوترش(Lophotrichous Flagellation) از واژه یونانی lophos به معنای «دسته» یا «تاج» گرفته شده است. در این آرایش، چندین تاژک بهصورت یک دسته در یک نقطه مشخص، معمولاً در یکی از قطبهای سلول باکتری، قرار میگیرند. این الگوی قرارگیری یکی از انواع تاژک باکتری است که به دلیل برخورداری از چند رشته تاژکی، ظرفیت بالایی برای ایجاد نیروی محرکه دارد.
انسجام هیدرودینامیکی و هماهنگی دسته تاژکها
حرکت باکتریهای لوپوترش تا حد زیادی به هماهنگی مکانیکی و برهمکنش هیدرودینامیکی میان رشتههای متعدد تاژکی وابسته است. هنگامی که موتورهای پایه در جهت مناسب و بهصورت هماهنگ میچرخند، پدیده هیدرودینامیکی ویژهای رخ میدهد.
با چرخش هر یک از تاژکها، جریان موضعی سیال ایجاد میشود. این جریانها و برهمکنشهای هیدرودینامیکی میان رشتههای مجاور، به همراستا شدن و پیچیدن آنها به دور یکدیگر کمک میکنند. در نتیجه، تاژکهای پراکنده در مدت کوتاهی به یک دسته ضخیم و منسجم تبدیل میشوند. به این ساختار «ابردسته» (Super-bundle) گفته میشود.
این دسته مانند یک ملخ بزرگ و یکپارچه عمل میکند و با ایجاد نیروی رانشی، حرکت باکتری را تسهیل میکند. چنین آرایشی میتواند در شرایطی که مقاومت سیال بیشتر است، به حفظ حرکت سلول کمک کند.
برای تغییر مسیر، در برخی باکتریها تغییر جهت چرخش موتورهای تاژکی باعث باز شدن پیچش ابردسته و پراکنده شدن رشتهها میشود. این رویداد میتواند با توقف یا تغییر جهت حرکت سلول همراه باشد و شرایط لازم را برای انتخاب مسیر جدید فراهم کند. در برخی گونهها، این تغییر وضعیت با الگویی از حرکت به نام «تومبل» (Tumble) همراه است. پس از هماهنگ شدن مجدد تاژکها و تشکیل دسته جدید، حرکت رو به جلو از سر گرفته میشود.
مزایا و قابلیتهای حرکتی
مهمترین مزیت ساختار لوپوترش، برخورداری از چند رشته تاژکی در یک قطب سلول است. همکاری این رشتهها میتواند نیروی محرکه و گشتاور حرکتی قابلتوجهی ایجاد کند و به باکتری در جابهجایی و حفظ حرکت کمک کند.
این ویژگی در محیطهایی که حرکت باکتری با مقاومت فیزیکی بیشتری روبهرو است، اهمیت دارد. برای مثال، حرکت در محیطهای ژلمانند و برخی ساختارهای مخاطی بدن میزبان به نیروی محرکه و سازگاری حرکتی بیشتری نیاز دارد.
در مجموع، آرایش لوپوترش نمونهای از سازماندهی چندین تاژک برای ایجاد حرکت هماهنگ است. بررسی این ساختار در کنار سایر انواع تاژک باکتری نشان میدهد که تعداد و نحوه قرارگیری تاژکها میتواند بر قدرت حرکت، تغییر مسیر و سازگاری باکتری با محیط تأثیر بگذارد.
نکته علمی: تشکیل ابردسته و پراکنده شدن تاژکها هنگام تغییر جهت چرخش، به گونه باکتری و ویژگیهای موتورهای تاژکی آن بستگی دارد. همچنین، نباید توانایی حرکت در محیطهای با ویسکوزیته بالا را به تمام باکتریهای لوپوترش تعمیم داد.
جدول مقایسهای سیستمهای تاژکی قطبی
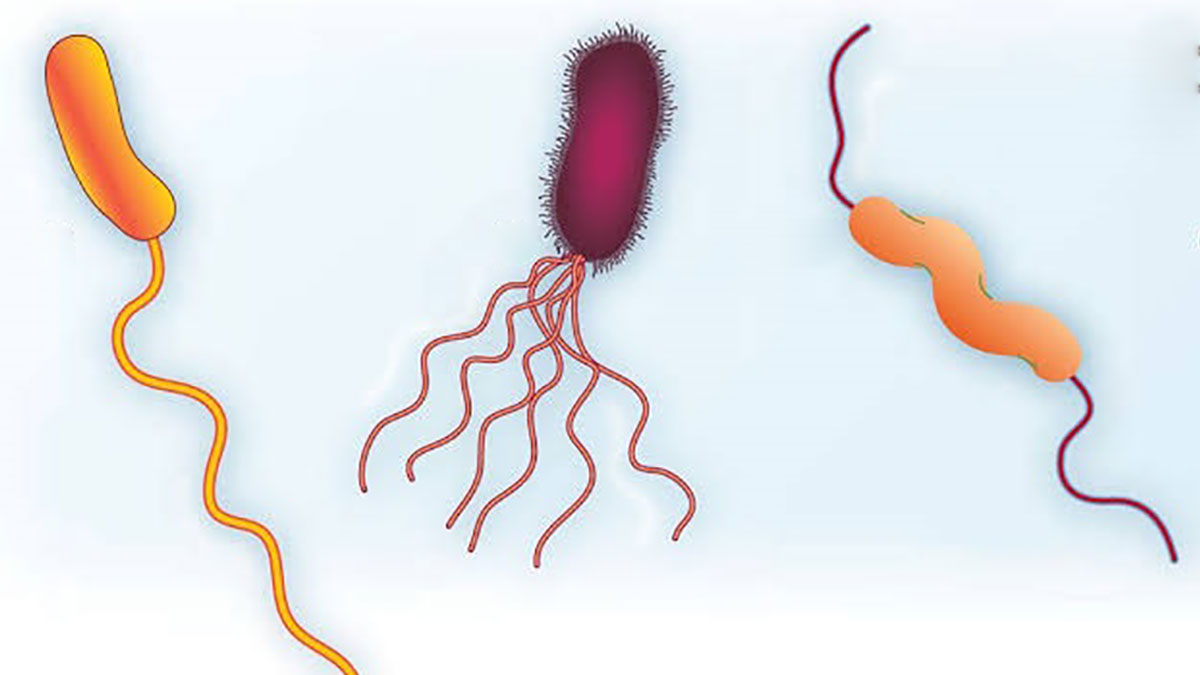
جدول زیر مهمترین ویژگیهای بیوفیزیکی، مکانیکی و زیستمحیطی سه نوع آرایش قطبی تاژکها را با یکدیگر مقایسه میکند.
جدول مقایسه ساختارهای مختلف آرایش قطبی تاژکها
| پارامتر مقایسه | آرایش مونوترش (Monotrichous) | آرایش آمفیترش (Amphitrichous) | آرایش لوپوترش (Lophotrichous) |
| تعداد تاژکها | یک عدد (۱) | دو عدد یا دو دسته مجزا | چندین عدد (معمولاً ۳ تا بیش از ۱۰) |
| محل قرارگیری | یک قطب سلول | هر دو قطب سلول | یک قطب سلول بهصورت دستهای |
| سازوکار حرکت | حرکت رو به جلو، حرکت معکوس و چرخش ناگهانی | حرکت متناوب و هماهنگ با نیروی رانشی | تشکیل دسته تاژکی و پراکنده شدن رشتهها |
| میزان گشتاور تولیدشده | حداقل | متوسط | حداکثر |
| توانایی حرکت در محیطهای ویسکوز | ضعیف؛ احتمال توقف حرکت زیاد است | کارایی متوسط | کارایی بالا؛ به دلیل تولید گشتاور زیاد |
| میزان مقاومت هیدرودینامیکی | کمترین مقاومت | مقاومت متوسط | بیشترین مقاومت هنگام تومبل |
| دقت تغییر جهت حرکت | تصادفی؛ ناشی از کمانش قلاب | تغییر مستقیم جهت در امتداد محور سلول (۱۸۰ درجه) | تغییر جهت از طریق باز شدن دسته تاژکی |
| نمونه باکتریها | Vibrio cholerae، Pseudomonas aeruginosa | Campylobacter jejuni، Spirillum volutans | Helicobacter pylori، Pseudomonas fluorescens |
انواع تاژک باکتری و پیامدهای بیوفیزیکی در بیماریزایی
آرایش فیزیکی تاژکها تنها بر بقای باکتریها در محیط طبیعی تأثیر نمیگذارد، بلکه در تعاملات مکانیکی میان باکتریهای بیماریزا و ارگانیسم میزبان نیز نقش مهمی دارد. این تعاملات در مراحل مختلف چرخه عفونت رخ میدهند.
عبور از سد مخاطی
اولین خط دفاعی در حفرههای داخلی بدن پستانداران، سد مخاطی است. این سد از یک لایه ژلمانند و ویسکوز تشکیل شده که ساختار آن حاصل اتصال متقاطع گلیکوپروتئینهایی به نام موسین است.
باکتریهای مونوترش، با وجود سرعت بالای حرکت در محیطهای آبی، اغلب نیروی فیزیکی کافی برای عبور از لایههای متراکم مخاطی را ندارند.
در مقابل، باکتریهای بیماریزای لوپوترش، مانند Helicobacter pylori، از دستههای چندتایی تاژک خود برای تولید گشتاور مکانیکی بالا استفاده میکنند. این نیروی فیزیکی در کنار رقیق شدن آنزیمی مخاط به کمک تولید آنزیم اورهآز (Urease)، به باکتری اجازه میدهد از لایه ضخیم مخاط معده عبور کند و سطح سلولهای پوششی زیرین را کلونیزه کند. به این ترتیب، باکتری در محلی مستقر میشود که از اسید معده محافظت شده است.
مکانوسنجی و آغاز تشکیل بیوفیلم
تاژکها علاوه بر نقش حرکتی، بهعنوان حسگرهای مکانیکی پیشرفته نیز عمل میکنند. هنگامی که یک باکتری متحرک با سطح جامدی برخورد میکند، مقاومت فیزیکی ناگهانی باعث توقف موتور تاژکی میشود. این مهار چرخش، جریان پروتون به داخل سلول را متوقف میکند و در نتیجه، پتانسیل غشایی تغییر مییابد.
در گونههای لوپوترش و آمفیترش، به دلیل مشارکت چندین موتور تاژکی، این چرخه بازخورد مکانیکی شدت بیشتری پیدا میکند. سیگنال سلولی حاصل از این فرایند، تغییر فوری در الگوی بیان ژنها (Transcriptomic Shift) را تحریک میکند. در نتیجه، بیان ژنهای مسئول ساخت تاژک کاهش مییابد و تولید مواد پلیمری چسبنده خارجسلولی (Extracellular Polymeric Substances یا EPS) افزایش پیدا میکند. این تغییرات، فرایند تشکیل بیوفیلم (Biofilm) را آغاز میکنند.
سخن پایانی
حرکت باکتریها تنها به جابهجایی سلول محدود نمیشود، بلکه یکی از عوامل مهم در سازگاری با محیط، بقا و بیماریزایی آنهاست. ساختار و نحوه قرارگیری تاژکها نقش تعیینکنندهای در کارایی حرکت، تولید نیروی مکانیکی و توانایی باکتری برای عبور از محیطهای مختلف دارند.
آرایش مونوترش با یک تاژک منفرد، امکان حرکت سریع در محیطهای آبی را فراهم میکند. آرایش آمفیترش با قرارگیری تاژکها در دو قطب سلول، تغییر جهت سریع و حرکت در فضاهای محدود را امکانپذیر میسازد. در مقابل، آرایش لوپوترش با استفاده از چندین تاژک و تشکیل دستههای هماهنگ، نیروی رانشی و گشتاور بیشتری تولید میکند. این ویژگی به باکتری کمک میکند در محیطهای متراکم و ویسکوز نیز حرکت کند.
شناخت تفاوت میان این سه نوع آرایش تاژکی، درک بهتری از ارتباط میان ساختار سلولی، سازوکار حرکت و سازگاری باکتریها با محیط فراهم میکند. همچنین بررسی نقش تاژکها در عبور از سدهای مخاطی و آغاز تشکیل بیوفیلم نشان میدهد که این ساختارها علاوه بر حرکت، در فرایند عفونت و بیماریزایی باکتریها نیز اهمیت دارند.
در نهایت، بررسی ساختار و عملکرد تاژکها میتواند به شناخت دقیقتر رفتار باکتریها و توسعه روشهای مؤثرتر برای کنترل عفونتهای باکتریایی کمک کند.


